深度解析医学证据,lxfs.net为你支撑决策
背景介绍
人工抗原呈递细胞(aAPC)提供了一种非遗传途径激活T细胞,但其体内性能常受限于预定义肽-主要组织相容性复合体I类(pMHC-I)库和向次级淋巴器官递送效率低下。过继性T细胞疗法已证明抗原特异性T细胞的治疗价值,但其更广泛应用仍受限于复杂的体外制造、产品质量变异和给药后持久性不一致。这些挑战促使研究者将选定的激活或编程步骤从体外培养转移到患者体内。当前大多数体内策略依赖靶向基因递送来编程内源性T细胞表达合成嵌合抗原受体(CARs),尽管有前景,但此类系统必须同时实现高效转染、细胞特异性和对转基因表达的精确控制,且未解决内源性T细胞受体(TCR)介导的抗原呈递需求。因此,能够将确定激活线索直接递送至T细胞的非遗传材料为体内免疫编程提供了补充途径。aAPC提供了一种此类策略。传统aAPC使用纳米或宏观材料呈递pMHC-I以接合TCR(信号1),连同共刺激配体(信号2),在某些设计中还有细胞因子或极化线索(信号3)。在模块化aAPC设计中,单个刺激的身份、密度和组合可通过材料组成和表面功能化调节。然而,其性能不仅取决于配体身份,还取决于免疫界面的物理组织。配体密度、纳米级间距、侧向流动性、膜流动性、颗粒几何形状和机械顺应性均可影响免疫突触形成和下游TCR信号。此外,aAPC可减少对内源性抗原呈递细胞(APCs)的依赖,后者在肿瘤中和细胞毒治疗后常受损。然而,aAPC的全身应用仍受两个耦合材料设计挑战限制。第一,大多数合成aAPC依赖重组pMHC-I复合物或外源加载肽,限制了抗原广度并需要预先鉴定合适表位。此类预定义制剂不适于具有异质性、患者特异性或演变抗原库的肿瘤。肿瘤细胞膜提供了潜在替代方案,因为它们保留了内源性加工的pMHC-I复合物以及难以在合成颗粒上重建的天然膜蛋白和脂质。然而,许多肿瘤细胞上MHC I类的低基础丰度限制了生产性pMHC-TCR相互作用并削弱其作为抗原呈递材料的效用。第二,aAPC组成必须支持进入响应性T细胞群所在的解剖部位。静脉给药后,许多合成和膜衍生纳米颗粒被肝脏和其他单核吞噬细胞系统成分快速隔离,因此仅有限部分到达次级淋巴器官,即初始和分化程度较低T细胞群集中的部位。对于全身给药的aAPC,抗原展示和器官分布因此是相互依存的设计要求:激活线索必须呈递在也能到达T细胞致敏生理部位的界面上。因此,需要一种整合内源性抗原展示与淋巴器官导向递送的材料。细胞衍生膜提供了通过源细胞生物学状态编码这些互补功能的机会。在此背景下,源细胞预处理可作为改变膜组成和生物性能的材料工程变量。治疗诱导的衰老增加肿瘤细胞中抗原加工机制和MHC I类表达,从而增强可用于CD8⁺T细胞识别的肽丰度。杂化纳米囊泡疫苗已利用这一特性,将衰老肿瘤膜与活化血小板膜结合以共同展示内源性抗原-MHC复合物和共刺激配体,从而支持直接和树突状细胞介导的T细胞激活。这些研究证明了生理重塑膜作为免疫活性材料的潜力,但未解决将全身给药aAPC导向次级淋巴器官的独特挑战,也未在脾脏导向的纳米界面上整合内源性pMHC-I展示与确定的共刺激和细胞因子支持。红细胞(RBC)膜提供了互补的转运模块。与RBC衰老相关的膜重塑促进脾脏识别和清除,表明衰老模拟RBC膜可编码器官级生物分布而无需外部偶联靶向配体。因此,衰老肿瘤膜和衰老模拟RBC膜可提供不同但互补的材料功能:前者提供抗原呈递富集的免疫界面,而后者使全身转运偏向脾脏。
研究思路
针对上述挑战,新加坡国立大学唐玮教授等团队构建了一种杂化纳米囊泡aAPC,通过将衰老癌细胞(SCC-NV)衍生的纳米囊泡与衰老模拟RBC(SRBC-NV)衍生的纳米囊泡融合而成。SCC-NV保留了亲代肿瘤细胞中增强的内源性pMHC-I呈递,而SRBC-NV使杂化构建体静脉给药后的生物分布偏向脾脏。所得杂化纳米囊泡(SS-hNV)进一步用抗CD28抗体(aCD28)和白细胞介素-2(IL-2)功能化,以提供确定的共刺激和细胞因子信号,生成信号1-3人工抗原呈递界面,称为SS-aAPC。具体而言,团队使用阿霉素(Dox)诱导B16-OVA细胞衰老,通过SA-β-gal染色确认衰老诱导,流式细胞术显示Dox处理增加H-2Kb-SIINFEKL、H-2Kb和总H-2表达,p21和γ-H2AX表达增加以及G1期细胞比例增加证实衰老相关状态建立;在MC38、4T1-OVA和CT26细胞中也验证了衰老相关状态和MHC-I表达上调。蛋白质组学分析显示衰老细胞上调MHC-I抗原呈递机制关键组分(H-2K、H-2D和β2-微球蛋白),KEGG通路富集显示抗原加工和MHC-I介导的呈递通路显著富集;SCC-NV保留升高的抗原呈递标志物,H-2Kb-SIINFEKL和H-2Kb水平分别比非衰老癌细胞衍生纳米囊泡(CC-NV)高2.20倍和2.32倍。通过用氯化锌(ZnCl2)和双(磺基琥珀酰亚胺基)辛二酸酯(BS3)处理RBC诱导衰老模拟膜重塑,SRBC显示膜收缩、表面皱褶和细胞形状异质性增加,SDS-PAGE显示Band 3寡聚体条带增强,体内荧光成像显示SRBC-NV脾脏积累比RBC-NV高1.40-1.52倍。通过FRET测定确认SCC-NV与SRBC-NV膜融合,纳米级流式细胞术显示单个囊泡事件同时具有两种荧光信号,SDS-PAGE显示SS-hNV保留两种源材料的特征蛋白条带,五个独立批次显示可比的粒径、膜蛋白谱和抗原呈递相关标志物表达,支持批次间一致性。通过Sulfo-SMCC将aCD28和IL-2偶联到SS-hNV上,偶联效率分别为69.2%和78.0%,DLS显示SS-hNV和SS-aAPC流体力学直径分别约为174.6 nm和190.9 nm,TEM显示SS-aAPC保持良好分散和均匀球形形态。相关内容以 Hybridnanovesicle artificial antigen-presenting cells integrate endogenous tumor antigen display with senescence-mimetic erythrocyte membrane-directed splenic T-cell priming 发表在 Biomaterials !
图片解析
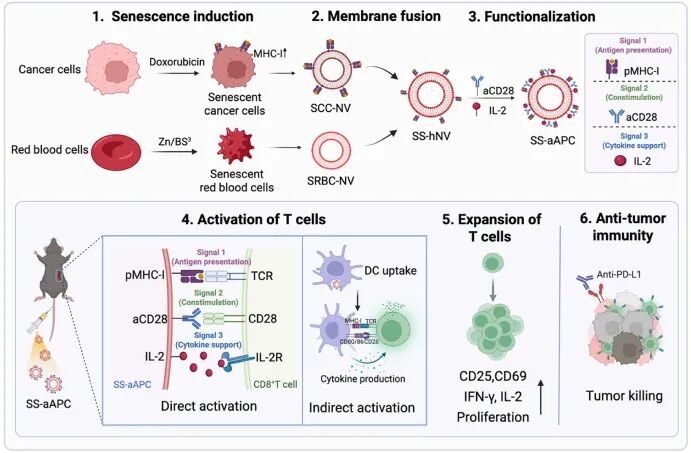
Scheme 1. SS-aAPC制备及体内抗肿瘤T细胞激活机制示意图:SS-aAPC通过融合衰老肿瘤细胞(SCC-NV)和衰老模拟红细胞(SRBC-NV)衍生的纳米囊泡生成,随后用抗CD28(aCD28)和IL-2进行表面功能化。SCC-NVs提供肿瘤相关抗原和pMHC-I复合物,而SRBC-NVs赋予脾脏导向生物分布并增强对脾脏免疫细胞群的可及性。连同aCD28介导的共刺激和IL-2支持的扩增,SS-aAPC通过互补的直接和树突状细胞(DC)介导的间接途径激活抗原特异性CD8⁺T细胞。具体而言,SS-aAPC通过pMHC-I/TCR识别直接刺激CD8⁺T细胞,同时间接促进DC成熟、细胞因子产生和抗原呈递以增强T细胞致敏。激活的效应T细胞随后浸润肿瘤组织并介导有效的肿瘤细胞消除。与抗PD-L1联合治疗进一步放大抗肿瘤免疫,导致增强的肿瘤抑制和延长生存。
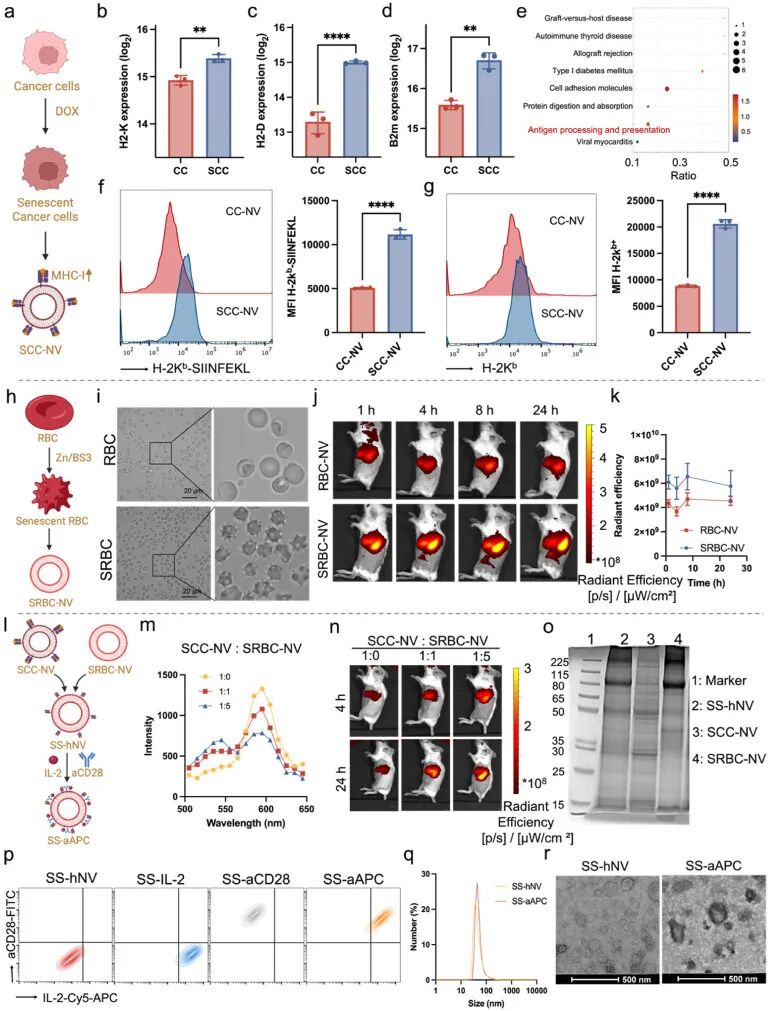
图1. SS-aAPC的设计与制备:(a) SCC-NV制备示意图;(b-d) CC和SCC中MHC-I相关蛋白(H2-K、H2-D和B2m)的相对表达水平;(e) 衰老B16-OVA细胞中差异表达蛋白的KEGG通路富集分析;(f, g) CC-NV和SCC-NV上H-2Kb-SIINFEKL复合物(f)和总H-2Kb表达(g)的代表性流式细胞术图和定量分析;(h) SRBC-NV制备示意图;(i) 天然RBC和SRBC的代表性图像;(j, k) BALB/c小鼠(n=3)静脉注射RBC-NV或SRBC-NV后1、4、8和24 h的代表性全身荧光图像(j)及相应定量分析(k);(l) SS-aAPC制备示意图;(m) 不同SCC-NV/SRBC-NV蛋白质量比制备的SS-hNV的FRET测定;(n) 不同膜比例配制的SS-hNV静脉注射后BALB/c小鼠(n=3)的代表性荧光图像;(o) SS-hNV、SCC-NV和SRBC-NV的SDS-PAGE分析;(p) 流式细胞术分析确认SS-aAPC上aCD28和IL-2的表面偶联;(q) DLS测量的SS-hNV和SS-aAPC流体力学尺寸分布;(r) SS-hNV和SS-aAPC的代表性TEM图像。
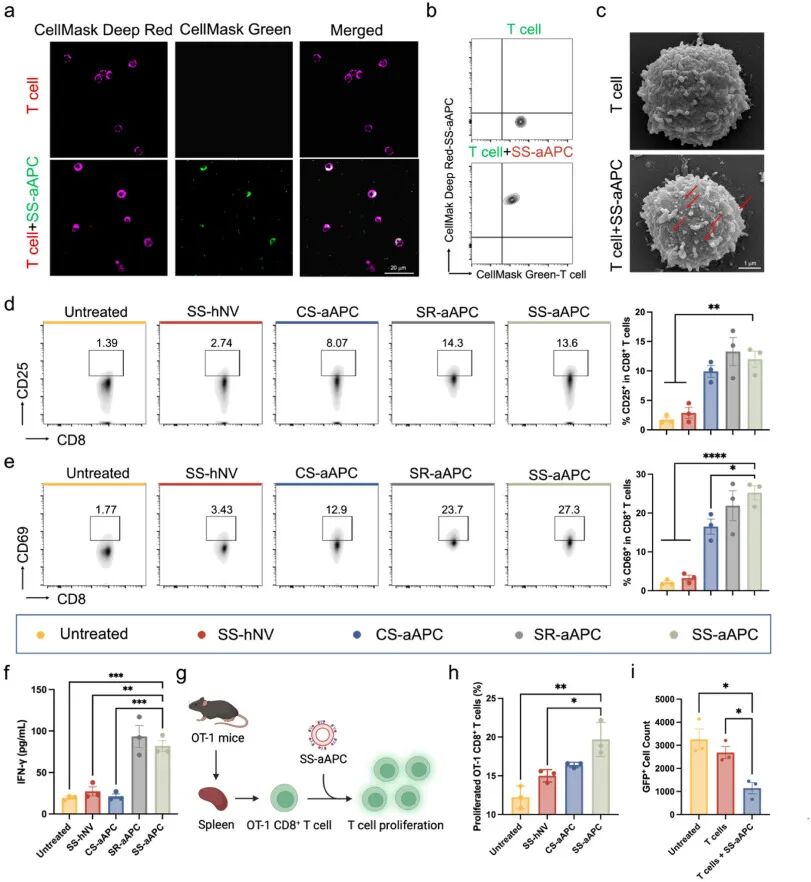
图2. SS-aAPC在体外诱导T细胞激活、增殖和细胞毒性:(a, b) 与SS-aAPC孵育或不孵育的原代CD8⁺T细胞的共聚焦图像(a)和流式细胞术分析(b),比例尺20 μm;(c) 与SS-aAPC孵育前后T细胞的扫描电镜图像,红色箭头指示与T细胞相互作用的SS-aAPC,比例尺1 μm;(d, e) 处理后原代CD8⁺T细胞上T细胞激活标志物CD25(d)和CD69(e)表达的代表性流式细胞术图和定量;(f) ELISA定量激活CD8⁺T细胞分泌的IFN-γ;(g) T细胞增殖实验示意图;(h) 与不同制剂共培养72 h后OT-1 CD8⁺T细胞的增殖,通过CFSE稀释评估;(i) SS-aAPC激活的T细胞对B16-GFP靶细胞的细胞毒性。
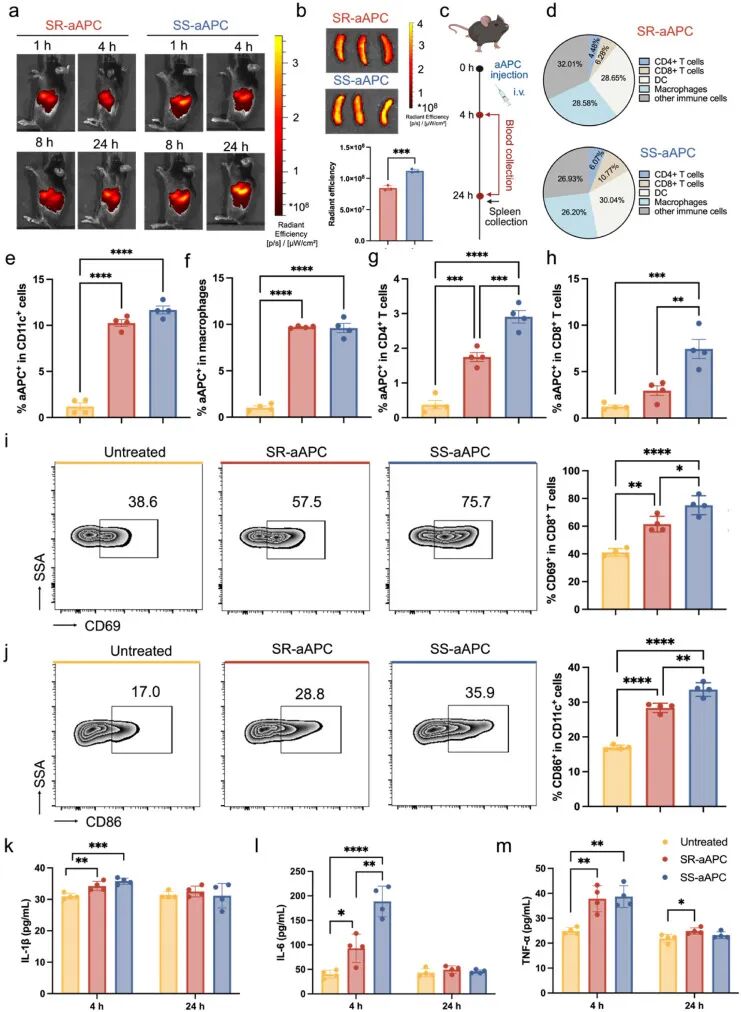
图3. SS-aAPC在体内改善脾脏积累和免疫激活:(a, b) B16-OVA荷瘤C57BL/6小鼠(n=3)静脉注射SR-aAPC或SS-aAPC后1、4、8和24 h的代表性全身荧光图像(a)以及24 h离体脾脏图像及相应定量分析(b);(c) 体内免疫激活和安全性评价实验示意图;(d) SR-aAPC或SS-aAPC与主要脾脏免疫细胞亚群结合频率;(e-h) 流式细胞术分析SS-aAPC分别与DCs(e)、巨噬细胞(f)、CD4⁺T细胞(g)和CD8⁺T细胞(h)的结合;(i) 脾脏CD8⁺T细胞上T细胞激活标志物CD69表达的代表性流式细胞术图和定量;(j) 脾脏DCs上DC成熟标志物CD86的代表性流式细胞术图和定量;(k-m) 注射后4和24 h通过ELISA测量的血清IL-1β(k)、IL-6(l)和TNF-α(m)水平。
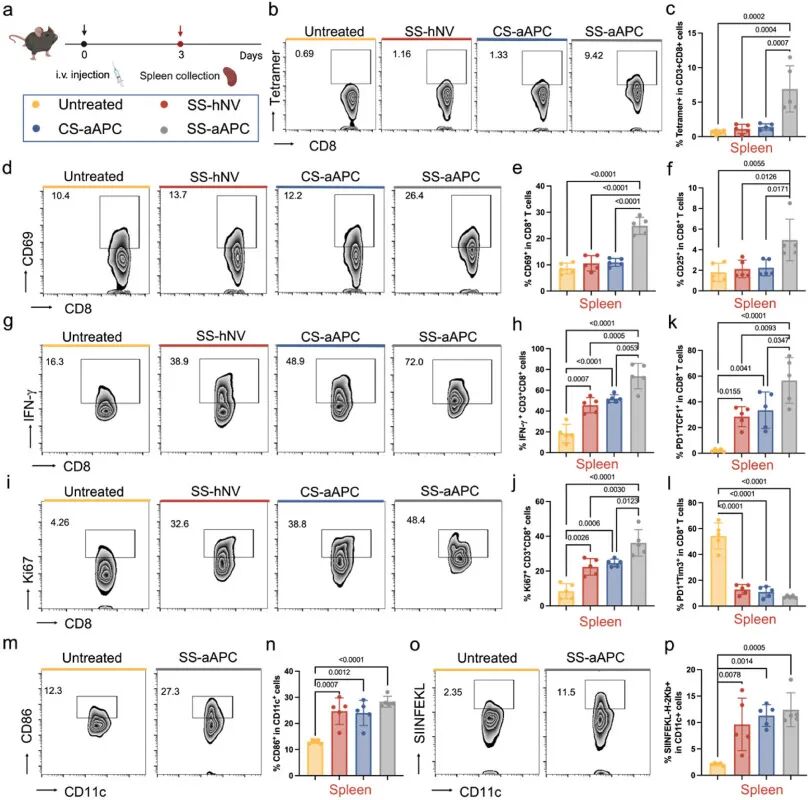
图4. B16-OVA衍生的SS-aAPC诱导的体内免疫激活:(a) 免疫分析实验示意图;(b, c) 治疗后脾脏中四聚体⁺CD8⁺T细胞的代表性流式细胞术图(b)和定量(c);(d, e) 治疗后脾脏中CD69⁺CD8⁺T细胞的代表性流式细胞术图(d)和定量(e);(f) 治疗后脾脏中CD25⁺CD8⁺T细胞的流式细胞术分析;(g-j) 脾脏中IFN-γ⁺CD8⁺T细胞(g, h)、Ki-67⁺CD8⁺T细胞(i, j)的代表性流式细胞术图和定量;(k, l) 治疗后脾脏中PD-1⁺TCF-1⁺CD8⁺祖样T细胞(k)、PD-1⁺TIM-3⁺CD8⁺T细胞(l)的流式细胞术分析;(m-p) 脾脏中CD86⁺CD11c⁺细胞(m, n)和H-2Kb-SIINFEKL⁺CD11c⁺细胞(o, p)的代表性流式细胞术图和定量。
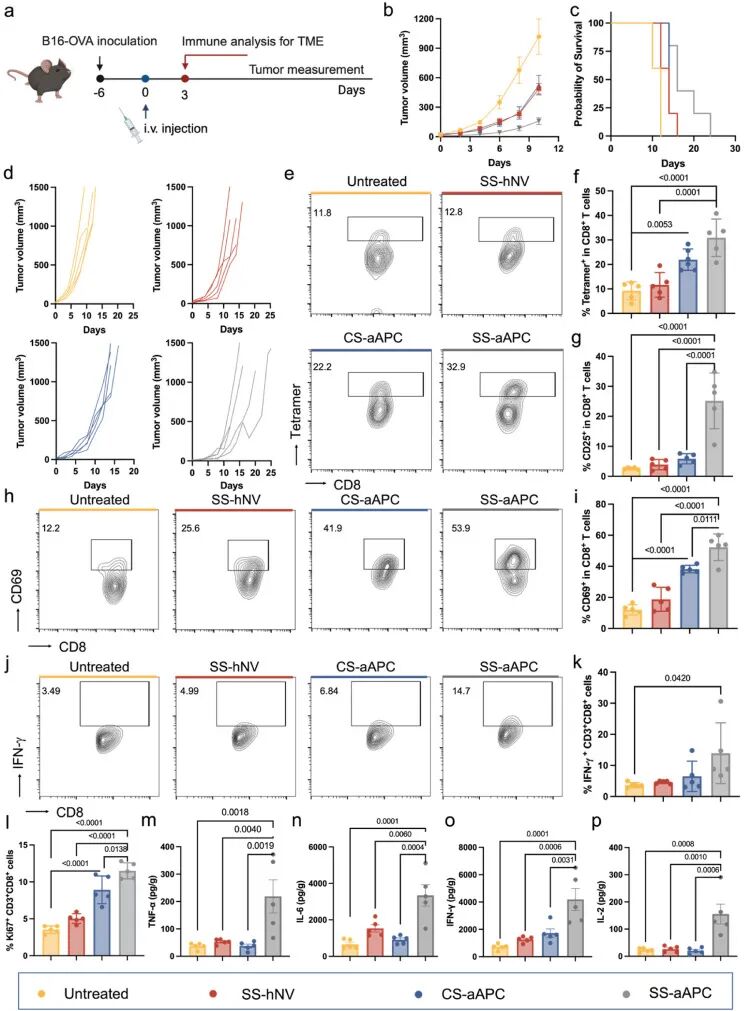
图5. aAPC的治疗疗效和瘤内免疫激活:(a) B16-OVA肿瘤模型中治疗方案示意图;(b-d) 治疗后肿瘤生长曲线(b)、生存曲线(c)和相应个体生长曲线(d)(n=5);(e, f) 治疗后肿瘤中四聚体⁺CD8⁺T细胞的代表性流式细胞术图(e)和定量(f);(g) 肿瘤中CD25⁺CD8⁺T细胞频率的流式细胞术分析;(h, i) 治疗后肿瘤中CD69⁺CD8⁺T细胞的代表性流式细胞术图(h)和定量(i);(j, k) 治疗后肿瘤中IFN-γ⁺CD8⁺T细胞的代表性流式细胞术图(j)和定量(k);(l) 肿瘤中Ki-67⁺CD8⁺T细胞频率的流式细胞术分析;(m-p) 通过ELISA测量的瘤内TNF-α(m)、IL-6(n)、IFN-γ(o)和IL-2(p)水平。
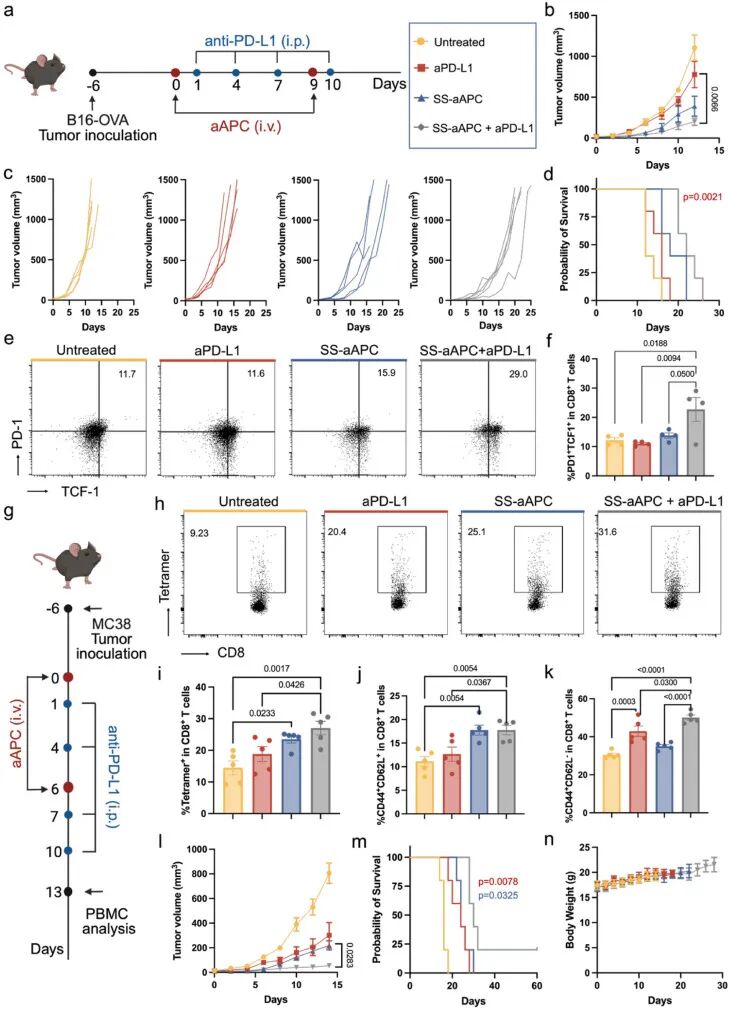
图6. SS-aAPC联合抗PD-L1治疗的增强抗肿瘤疗效:(a) B16-OVA肿瘤模型中联合治疗方案示意图;(b-d) 治疗后肿瘤生长曲线(b)、相应个体生长曲线(c)和生存曲线(d)(n=5);(e, f) 外周血中PD-1⁺TCF-1⁺CD8⁺T细胞的代表性流式细胞术图(e)和定量(f);(g) MC38肿瘤模型及治疗方案示意图;(h, i) PBMCs中Adpgk抗原特异性四聚体⁺CD8⁺T细胞的代表性流式细胞术图(h)和定量(i);(j, k) PBMCs中CD44⁺CD62L⁺中央记忆CD8⁺T细胞(j)和CD44⁺CD62L⁻效应记忆CD8⁺T细胞(k)的定量分析;(l) MC38肿瘤生长曲线;(m) 生存曲线;(n) 治疗期间体重监测。
结论
该研究开发了一种模块化仿生aAPC纳米平台,旨在解决限制体内T细胞指令的两个关键约束:pMHC-I展示不足和向次级淋巴器官递送效率低下。治疗诱导的衰老增强了肿瘤膜上的抗原加工能力和MHC I类呈递,相对于非衰老膜增加了表面MHC-I和模型pMHC-I展示,从而在体外增强了CD8⁺T细胞激活和肿瘤导向细胞毒性。同时,衰老模拟RBC膜的引入提供了优先的脾脏积累,改善了进入初始T细胞致敏主要发生的解剖部位的可及性,并解决了合成和膜衍生aAPC共有的主要生物分布限制。用aCD28和IL-2功能化进一步实现了共刺激和细胞因子线索的协调递送。这种整合设计在体内转化为增强的脾脏富集、强效T细胞致敏和功能编程、已建立B16-OVA肿瘤的抑制,以及在B16-OVA和MC38模型中对检查点阻断的增强作用。具体而言,SS-aAPC诱导的抗原特异性CD8⁺T细胞扩增相对于CS-aAPC、SS-hNV和未处理对照分别增加4.9倍、6.19倍和10.54倍;SS-aAPC增加了TCF-1⁺PD-1⁺祖样CD8⁺T细胞比例,同时降低TIM-3⁺耗竭CD8⁺T细胞频率;在B16-OVA模型中,SS-aAPC治疗第10天肿瘤生长抑制率达85.39%,而CS-aAPC和SS-hNV分别为49.67%和52.68%;SS-aAPC联合抗PD-L1在B16-OVA模型中第12天肿瘤生长抑制率达81.94%,超过Bliss预测的75.18%,中位生存期延长至22天(PBS组12天);在MC38模型中,联合治疗第14天肿瘤生长抑制率达93.26%,超过Bliss预测的78.36%达14.90%,中位生存期从对照组的16天延长至30天,联合治疗组一只小鼠实现完全肿瘤消退;联合治疗还增加了外周血中TCF-1⁺PD-1⁺祖样CD8⁺T细胞频率,在MC38模型中中央记忆CD8⁺T细胞达到约17.8%(比PBS对照组增加1.60倍),效应记忆CD8⁺T细胞增加至50.1%(相比PBS、抗PD-L1和SS-aAPC单药分别增加1.64倍、1.17倍和1.43倍)。在免疫原性差的4T1肿瘤模型中,4T1衍生的SS-aAPC治疗使瘤内CD8⁺T细胞频率较对照组增加2.59倍,肿瘤抗原特异性CD8⁺T细胞频率增加2.20倍。总之,该工作为开发仿生aAPC用于体内T细胞编程提供了基础,通过整合衰老增强的抗原呈递与器官导向生物分布。这种模块化设计提供了一种潜在肿瘤适应性策略,用于在不同抗原景观中接合T细胞应答并增强实体瘤中免疫检查点阻断的疗效。作者也指出,SS-aAPC的治疗反应主要通过延迟肿瘤进展而非持久肿瘤根除来体现,特别是SS-aAPC单药治疗完全肿瘤消退有限,表明系统性T细胞致敏单独不足以克服已建立肿瘤内的多重免疫抑制屏障;虽然SS-aAPC增加了表型定义的TCF-1⁺PD-1⁺祖样CD8⁺T细胞,但其长期持久性、分化潜力和召回能力仍有待功能验证;当前研究仅在雌性小鼠中进行,由于生物学性别可影响免疫应答、纳米颗粒生物分布和肿瘤进展,需要在两性中开展研究以建立观察效果的普适性;此外,当前流式细胞术实验未包括荧光减一(FMO)和匹配的无关四聚体对照,未来研究纳入这些额外对照将进一步加强门控定义和四聚体特异性验证;aCD28目前通过非定向偶联固定,抗体取向和有效价态未定义,这可能降低功能亲合力并引入共刺激效力变异,取向控制的展示策略(如Fc结合捕获模块或位点特异性偶联)可标准化抗体呈递并实现配体密度和纳米级间距的系统调谐以优化免疫突触形成;aCD28和IL-2仅代表更广泛设计空间中的一个点,替代共刺激配体(如4-1BB、OX40、CD27)和细胞因子方案(如IL-7、IL-15、IL-21或具有降低Treg偏向的工程化IL-2变体)可单独或组合选择以优先使CD8⁺T细胞偏向干细胞样或记忆前体状态、改善持久性并减少抑制性细胞群的不期望扩增;从转化角度看,关键问题包括SS-aAPC在不同TME中的稳定性和免疫行为、最佳SCC:SRBC膜比例如何随肿瘤类型变化,以及淋巴积累是否可扩展到脾脏以外至外周淋巴结。